脑脊液(cerebrospinal fluid,CSF)为中枢神经系统提供相对稳定的细胞外环境,其酸碱平衡对于维持正常神经元兴奋性和脑功能至关重要[1-4]。脑脊液中的pH稳态主要依赖 CO₂/HCO₃⁻ 缓冲体系以及跨膜离子转运过程,其中碳酸氢根离子(HCO₃⁻)的跨膜运输由多类膜转运蛋白精确调控[3-5]。脉络丛上皮细胞是脑脊液生成和离子稳态调控的重要场所,其表达的多种离子转运蛋白共同维持脑脊液的组成和酸碱环境[6-7]。Na⁺依赖性 Cl⁻/HCO₃⁻ 交换体 NCBE(SLC4A10)是SLC4碳酸氢盐转运蛋白家族的重要成员,在脉络丛上皮细胞和神经元中高表达。NCBE通过耦联 Na⁺、Cl⁻ 和 HCO₃⁻ 的跨膜转运,参与脑脊液 pH 调控以及神经元细胞内酸碱稳态的维持[5-8]。遗传学研究显示,SLC4A10 功能异常可与癫痫、智力障碍、自闭症谱系障碍及其他神经发育异常相关[9-12],进一步提示其在中枢神经系统稳态中的重要作用。然而, NCBE如何识别不同离子、如何实现离子耦联和跨膜运输,以及其活性如何受到小分子抑制剂调控,一直缺乏明确的分子机制。
2026年10月1日,复旦大学脑科学转化研究院/附属中山医院杨涵婷团队,联合复旦大学脑科学转化院迟喻丹团队与中山医院丁晶团队在《Nature Communications》发表题为 “Substrate Coupling and Inhibition in Human Na⁺-Dependent Cl⁻/HCO₃⁻ Exchanger NCBE (SLC4A10)” 的研究论文。该研究利用冷冻电镜解析了人源 NCBE在多种底物及抑制剂结合状态下的高分辨率结构,并结合细胞功能实验和分子动力学模拟,系统揭示了 NCBE 对 Na⁺、Cl⁻ 和 HCO₃⁻ 的识别与耦联机制、DIDS 的抑制方式以及可能的“电梯式”构象转换过程,为理解 NCBE 介导的脑脊液 pH 调控提供了结构和机制基础。
研究发现,NCBE 内部存在高度保守的离子结合区域,可协调 Na⁺、Cl⁻ 和 HCO₃⁻。其中,Cl⁻ 与 HCO₃⁻ 共享同一保守阴离子结合口袋,为 NCBE 介导 Cl⁻/HCO₃⁻ 交换提供了直接的结构依据。研究还观察到K⁺可占据经典Na⁺结合区域,提示NCBE在单价阳离子识别方面具有一定的选择性灵活性。功能实验进一步验证了多个关键结合位点残基对于 NCBE 转运活性的必要性。
此外,研究团队解析了阴离子转运抑制剂 DIDS 与 NCBE 的复合物结构。DIDS 结合于胞外转运通路入口上方,阻碍底物进入,并将 NCBE 稳定在外向开放构象。结合不同状态下的结构比较、分子动力学模拟以及 AlphaFold3 预测的内向开放模型,研究提出 NCBE 可能通过类似“电梯式”的构象转换完成跨膜转运,即转运核心结构域携带结合的离子和底物,相对于门控结构域发生跨膜位移,从而实现底物在膜两侧的交替转运。该研究从原子水平建立了 NCBE 离子识别、底物耦联、药理抑制与构象变化之间的联系,为理解脉络丛介导的脑脊液 HCO₃⁻ 转运和 pH 稳态调控提供了结构基础,也为进一步解析 SLC4A10 相关神经发育疾病的分子机制及探索 NCBE 的选择性调控提供了新的依据。研究发现,NCBE 内部存在能够协同识别 Na⁺、Cl⁻ 和 HCO₃⁻ 的底物结合口袋,为其介导 Na⁺依赖性 Cl⁻/HCO₃⁻ 交换提供了直接的结构基础。值得注意的是,研究还观察到 NCBE 对 K⁺ 具有一定的结合能力,提示该转运体在单价阳离子选择性方面可能具有一定的适应性。这一结果拓展了人们对 SLC4 家族单价阳离子驱动HCO3-转运的分子机制的认识。
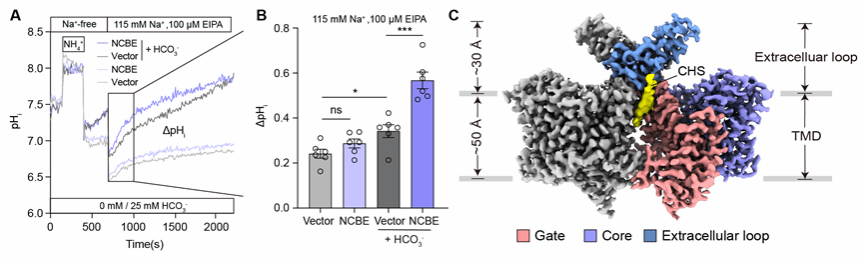
图1. NCBE介导HCO3-跨膜转运调控pH
该研究从原子水平揭示了 NCBE 参与脑部pH稳态维持的分子基础。在正常情况下,NCBE通过Na⁺驱动HCO₃⁻跨膜转运,介导Cl-/ HCO3-交换,从而帮助神经元和脉络丛上皮细胞维持适宜的酸碱环境,保障脑脊液分泌和神经元兴奋性的正常调控;而当 NCBE基因突变或功能缺失而失活时,HCO₃⁻ 转运受阻,可能导致脑脊液及细胞内酸碱平衡紊乱,进而影响神经元兴奋性、脑室发育和神经系统功能。这项工作不仅为理解脑部pH调控提供了重要的结构生物学依据,也为解析 SLC4A10 相关神经发育疾病的致病机制、评估疾病突变的功能影响,以及探索靶向 NCBE 的干预策略提供了新的理论基础。
复旦大学脑科学转化研究院孙培欣、王馨敏及黄阳博士为该论文的共同第一作者。复旦大学脑科学转化研究院/附属中山医院的杨涵婷研究员、复旦大学脑科学转化研究院的迟喻丹研究员以及中山医院的丁晶教授为该论文的通讯作者。该研究得到了科技创新2030—“脑科学与类脑研究”重大项目、国家自然科学基金、国家重点研发计划等项目的资助。
全文链接:https://www.nature.com/articles/s41467-026-77504-1
参考文献
[1] Fisher RS, et al. ILAE Official Report: A practical clinical definition of epilepsy. Epilepsia. 2014.
[2] Scheffer IE, et al. ILAE classification of the epilepsies. Epilepsia. 2017.
[3] Chesler M, Kaila K. Modulation of pH by neuronal activity. Trends Neurosci. 1992.
[4] Chesler M. Regulation and modulation of pH in the brain. Physiol Rev. 2003.
[5] Romero MF, et al. The SLC4 family of bicarbonate (HCO₃⁻) transporters. Mol Aspects Med. 2013.
[6] Damkier HH et al. Cerebrospinal fluid secretion by the choroid plexus. Physiol Rev. 2013.
[7] Johnsen et al. Mechanisms of cerebrospinal fluid secretion by the choroid plexus epithelium. Clinical Anatomy. 2025.
[8] Jacobs S et al. Mice with targeted Slc4a10 gene disruption have small brain ventricles and show reduced neuronal excitability. PNAS. 2008.
[9] Sebat J, et al. Strong association of de novo copy number mutations with autism. Science. 2007.
[10] Gurnett CA, et al. Disruption of sodium bicarbonate transporter SLC4A10 in a patient with complex partial epilepsy and mental retardation. Arch Neurol. 2008.
[11] Fasham J, et al. SLC4A10 mutation causes a neurological disorder associated with impaired GABAergic transmission. Brain. 2023.
[12] Maroofian R, et al. Biallelic variants in SLC4A10 encoding the sodium-dependent chloride-bicarbonate exchanger NCBE lead to a neurodevelopmental disorder. Genet Med. 2023.



 地址:上海市徐汇区医学院路138号
 邮编:200032
 电话/传真:021-54237056
 邮箱:itbr@fudan.edu.cn